
等電点とは?電荷がゼロになるpHとアミノ酸・タンパク質の性質を解説!
アミノ酸やタンパク質を学ぶと、等電点という言葉が登場します。
酸性やアルカリ性の条件によって分子の電荷が変わるため、溶けやすさ、移動のしやすさ、分離のされ方まで大きく変化します。
等電点は生化学の基礎用語である一方、電気泳動、タンパク質精製、食品加工、医薬品開発などにもつながる重要な考え方です。
この記事では、等電点における電荷とpHの関係を出発点に、アミノ酸とタンパク質の性質、計算方法、実験での活用法までを順に整理します。
等電点の意味と電荷の均衡
それではまず等電点の意味と電荷の均衡について解説していきます。
等電点の基本定義
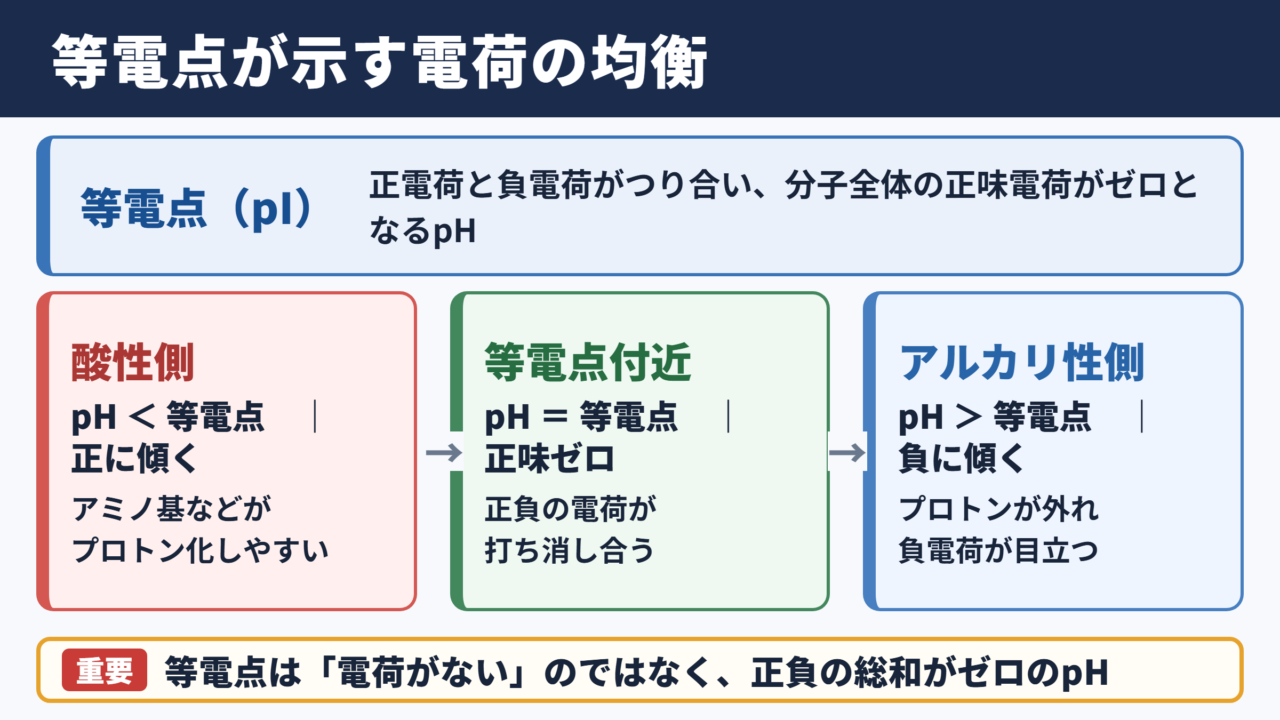
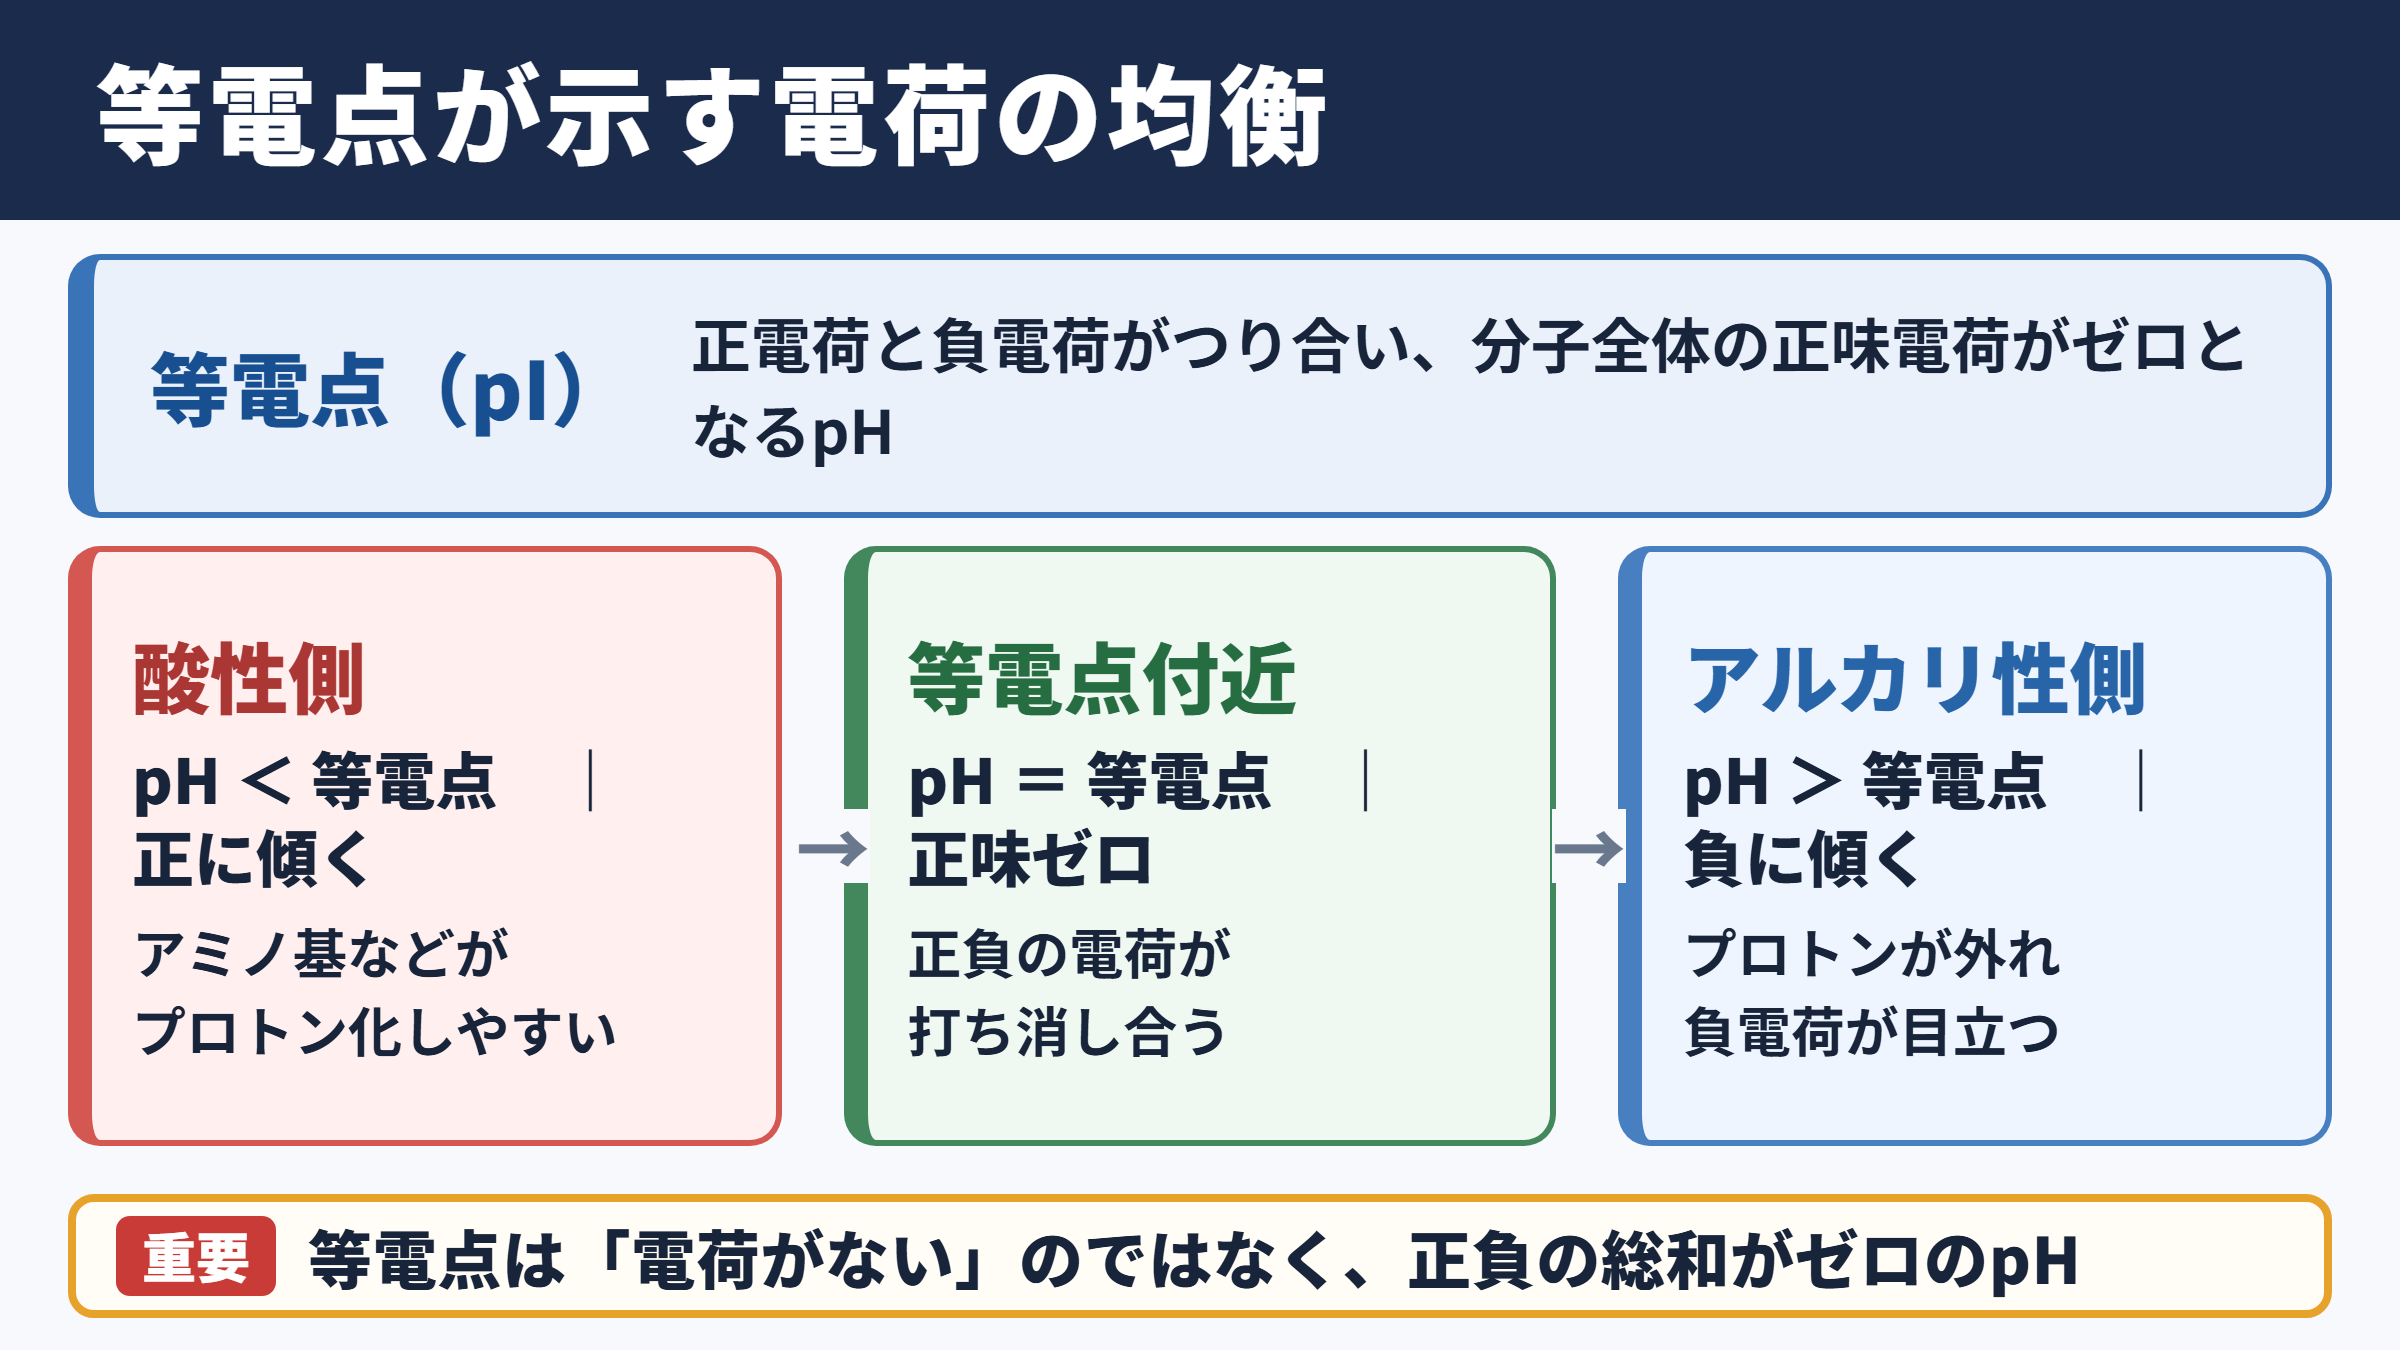
等電点とは、分子が持つ正電荷と負電荷の量がつり合い、分子全体としての正味電荷がゼロになるpHのことです。
英語ではisoelectric pointと呼ばれ、一般にpIと表記されます。
ここでいう電荷ゼロは、分子の内部に電荷を持つ原子団が一切ないという意味ではありません。
アミノ基は正に帯電しやすく、カルボキシル基は負に帯電しやすい性質を持ちます。
等電点では、それぞれの電荷が打ち消し合うため、分子全体の見かけ上の電荷がゼロになります。
たとえばアミノ酸は、アミノ基とカルボキシル基を同時に持つ両性電解質です。
水溶液中では、プラスとマイナスの両方を持つ双性イオンとして存在する状態があります。
この双性イオンが多くなるpHの近くが、アミノ酸にとっての等電点です。
等電点は、正電荷も負電荷も存在しない状態ではありません。
正負の電荷が釣り合い、総和としてゼロになるpHを示す指標です。
等電点を理解すると、なぜあるpHでタンパク質が沈殿しやすくなるのか、なぜ電気泳動で移動しにくくなるのかを説明しやすくなります。
生体分子の振る舞いをpHから予測するための、基本的なものさしといえるでしょう。
pH変化による正味電荷
溶液のpHが変わると、アミノ酸やタンパク質の官能基はプロトンを受け取ったり放出したりします。
酸性側では水素イオンが多いため、アミノ基などがプロトン化しやすく、分子全体は正に傾きます。
反対にアルカリ性側ではプロトンが外れやすくなり、カルボキシル基などの負電荷が目立つようになります。
このため、pHが等電点より低いか高いかによって、分子の移動方向や溶解性が変わります。
| 溶液のpH | 分子の正味電荷 | 主な状態 | 電場中での傾向 |
|---|---|---|---|
| 等電点より低い領域 | 正 | プロトン化が進みやすい状態 | 陰極側へ移動しやすい |
| 等電点付近 | ほぼゼロ | 正負の電荷が均衡した状態 | 移動が小さくなりやすい |
| 等電点より高い領域 | 負 | 脱プロトン化が進みやすい状態 | 陽極側へ移動しやすい |
pHが低いほど必ず正、高いほど必ず負と単純化しすぎないことも大切です。
実際には、分子内にどのような解離性基があり、それぞれのpKaがどこにあるかで変化の仕方が決まります。
ただし基本原則として、pHがpIより低ければ正に、高ければ負に帯電しやすいと覚えると、多くの問題を整理できます。
中性pHとの違い
等電点と中性を同じ意味として扱うのは誤りです。
中性は水溶液のpHが7付近であることを指し、等電点は特定の分子の正味電荷がゼロになるpHを指します。
したがって、等電点がpH7になるアミノ酸やタンパク質もありますが、すべてがそうなるわけではありません。
酸性アミノ酸は酸性側に等電点を持ちやすく、塩基性アミノ酸はアルカリ性側に等電点を持ちやすい傾向があります。
タンパク質の場合は、含まれるアミノ酸残基の種類と数、末端基、立体構造、修飾状態によって等電点が幅広く変わります。
たとえば酸性残基が多いタンパク質なら、比較的低いpHで電荷がつり合いやすくなります。
リシンやアルギニンのような塩基性残基が多いタンパク質では、より高いpHで等電点に達しやすいでしょう。
中性は溶液そのものの性質です。
等電点は分子ごとに決まる電荷均衡のpHです。
両者を区別すると、pHと生体分子の性質を正確に読み取れます。
アミノ酸の構造と等電点
続いてはアミノ酸の構造と等電点を確認していきます。
アミノ基とカルボキシル基
アミノ酸の基本構造には、アミノ基、カルボキシル基、水素原子、側鎖が含まれます。
アミノ基は酸性条件でプロトンを受け取り、プラスの電荷を帯びやすい部分です。
カルボキシル基は塩基性条件でプロトンを失い、マイナスの電荷を帯びやすい部分になります。
この二つの官能基があるため、アミノ酸は酸としても塩基としても振る舞えます。
水中ではカルボキシル基から出たプロトンがアミノ基側へ移るような形となり、双性イオンが形成されます。
双性イオンは正負の電荷を同時に持つため、全体として中性に近い性質を示します。
しかし、溶液のpHが変わればプロトンの受け渡しの割合も変わるため、常に同じ形で存在するわけではありません。
アミノ酸は一つの固定された構造ではなく、pHに応じた複数のイオン形の混合物として理解するのが適切です。
側鎖による等電点の差
グリシンやアラニンのように、側鎖に強く解離する基を持たないアミノ酸では、主にアミノ基とカルボキシル基が等電点を決めます。
一方で、アスパラギン酸やグルタミン酸は側鎖にもカルボキシル基を持ちます。
負電荷になりやすい基が増えるため、これらの等電点は低い側へ寄ります。
リシン、アルギニン、ヒスチジンには塩基性を示す側鎖があり、正電荷を持ちやすいことが特徴です。
その結果、等電点は比較的高い側に位置します。
システインやチロシンの側鎖も条件によって解離するため、厳密な電荷計算では無視できません。
特にシステインのチオール基は、酸化還元状態や周囲の環境とも関係するため、タンパク質中での挙動を考える際に注意が必要です。
| アミノ酸の分類 | 側鎖の特徴 | 等電点の傾向 | 代表例 |
|---|---|---|---|
| 中性アミノ酸 | 強い酸性基や塩基性基が少ない | 中性付近 | グリシン、バリン、ロイシン |
| 酸性アミノ酸 | カルボキシル基を側鎖に持つ | 酸性側 | アスパラギン酸、グルタミン酸 |
| 塩基性アミノ酸 | アミノ基やグアニジノ基などを持つ | アルカリ性側 | リシン、アルギニン、ヒスチジン |
| 特殊な解離性側鎖を持つアミノ酸 | チオール基やフェノール性水酸基を持つ | 条件により変化 | システイン、チロシン |
pKaから求める考え方
アミノ酸の等電点は、解離に関係するpKaを利用して求めます。
pKaは、ある官能基が半分程度プロトンを失った状態に対応するpHの目安です。
単純な中性アミノ酸では、カルボキシル基に対応する低いpKaと、アミノ基に対応する高いpKaの中間に等電点があります。
計算では、正味電荷がゼロになる双性イオンの状態を挟む二つのpKaを平均します。
中性側鎖を持つアミノ酸の基本式です。
pI = 電荷ゼロの状態を挟む二つのpKaの平均
たとえばpKaが2.3と9.6なら、pIはおよそ6.0になります。
酸性アミノ酸では、電荷ゼロの状態を挟む低い二つのpKaを使います。
塩基性アミノ酸では、電荷ゼロの状態を挟む高い二つのpKaを選びます。
ここで重要なのは、単に最小と最大のpKaを平均するのではなく、正味電荷ゼロの形を挟むpKaを見つけることです。
構造式ごとにプロトンが一つずつ外れたときの電荷を書き出すと、選ぶべきpKaを判断しやすくなります。
タンパク質の等電点と溶解性
続いてはタンパク質の等電点と溶解性を確認していきます。
多数の解離性基
タンパク質は多数のアミノ酸がペプチド結合でつながった高分子です。
そのため、単純なアミノ酸よりも多くの解離性基を持ち、等電点の計算と解釈は複雑になります。
タンパク質の電荷に影響する主な部位は、N末端、C末端、アスパラギン酸、グルタミン酸、リシン、アルギニン、ヒスチジン、システイン、チロシンなどです。
それぞれの残基がどの程度露出しているか、近くにどのような電荷があるかによって、実際のpKaは遊離アミノ酸の場合とずれることがあります。
立体構造の内部に埋もれた残基は、水に接している残基と異なる環境に置かれます。
したがって、配列だけから推定したpIと、実験で観測されるpIが完全には一致しない場合もあります。
それでもアミノ酸組成を基にした推定は、精製条件や電気泳動条件を検討するうえで有用です。
タンパク質の等電点は、単一の官能基で決まる値ではありません。
多数の残基、末端基、立体構造、周辺環境が重なった結果として表れます。
等電点付近での沈殿
タンパク質は、等電点付近で溶解度が低下しやすいことで知られています。
分子の正味電荷が大きいときは、同じ電荷を持つタンパク質分子同士が反発しやすく、水和も保たれやすくなります。
ところが等電点に近づくと静電的な反発が弱まり、分子同士が近づきやすくなります。
疎水性相互作用や分子間の引力が優勢になると、凝集や沈殿が起こりやすくなるでしょう。
この性質は、タンパク質の精製だけでなく、食品の加工でも利用されています。
牛乳中のカゼインは酸を加えて等電点付近に近づけると凝集し、カードとして分離されます。
ヨーグルトやチーズの製造を理解する際にも、タンパク質の電荷と溶解性の関係が役立ちます。
等電点付近では必ず沈殿するとは限りませんが、凝集しやすくなる条件として特に重要です。
塩濃度、温度、界面活性剤、糖、他のタンパク質の存在も、最終的な溶解性に影響します。
緩衝液条件の設計
タンパク質を安定に扱いたい場合、保存液や反応液のpHを等電点から離すことがよくあります。
等電点から十分に離れたpHでは正味電荷が生じ、分子間の反発によって分散しやすくなるためです。
ただし、等電点から遠ければ遠いほど良いとは限りません。
極端な酸性やアルカリ性では、タンパク質の立体構造が崩れ、変性や失活を招く可能性があります。
目的のタンパク質が持つ安定なpH範囲、酵素活性の最適pH、塩濃度、温度を合わせて考える必要があります。
緩衝液にはリン酸緩衝液、トリス緩衝液、酢酸緩衝液などがありますが、目的分子との相互作用にも注意が必要です。
金属イオンを必要とする酵素では、キレート作用を持つ成分が活性に影響する場合もあります。
タンパク質の保存条件を考える際の基本です。
等電点付近は凝集しやすいため注意します。
ただしpIから離しすぎて変性を起こさないよう、活性と安定性を実験で確認します。
等電点と電気泳動の関係
続いては等電点と電気泳動の関係を確認していきます。
電場中の移動方向
電気泳動は、荷電した分子が電場の中を移動する性質を利用する分析法です。
タンパク質の正味電荷はpHによって変化するため、同じ分子でも泳動液の条件によって移動方向や速度が変わります。
pHがpIより低い場合、タンパク質は正に帯電しやすく、陰極へ引かれます。
pHがpIより高い場合は負に帯電しやすく、陽極へ移動しやすくなります。
等電点では正味電荷がほぼゼロとなるため、電場による移動の駆動力が小さくなります。
ただし実際のゲル中では、分子サイズ、形状、ゲルの網目、電気浸透なども影響するため、移動の有無を電荷だけで断定することはできません。
それでも、pHとpIの大小関係は泳動挙動を読む最初の手がかりになります。
等電点電気泳動
等電点電気泳動は、pH勾配の中でタンパク質を移動させ、それぞれの等電点で止める方法です。
タンパク質がpIより低いpH領域にいると正に帯電するため、より高いpH側へ移動します。
反対にpIより高いpH領域に入ると負に帯電するため、低いpH側へ戻る方向に力を受けます。
こうして分子は、自身の正味電荷がゼロになる位置に集まりやすくなります。
サイズの違いだけでは分けにくいタンパク質でも、pIの差を利用することで分離できる点が大きな特徴です。
二次元電気泳動では、最初に等電点で分け、次に分子量の違いで分ける方法が用いられます。
多くのタンパク質を同時に解析したいプロテオーム解析で、長く重要な役割を担ってきました。
| 分析法 | 主な分離原理 | 等電点との関係 | 用途の例 |
|---|---|---|---|
| 等電点電気泳動 | pIの違い | 分子がpIの位置へ集まる | タンパク質の電荷差の分離 |
| SDSポリアクリルアミドゲル電気泳動 | 主に分子量の違い | SDSにより本来の電荷差を小さくする | 分子量推定、純度確認 |
| ネイティブ電気泳動 | 電荷、形状、サイズの複合要因 | pHとpIが移動度に影響 | 複合体や活性状態の観察 |
分析条件の注意点
電気泳動で等電点を利用する際は、pH勾配の範囲を試料に合わせることが大切です。
予想されるpIが4付近のタンパク質を広いpH範囲で分析すると、分離帯が密集して見えにくくなる場合があります。
狭い範囲のpH勾配を選べば、近いpIを持つタンパク質をより細かく見分けられることがあります。
一方で、強く塩基性または酸性のタンパク質は、一般的なpH勾配の端に寄りすぎる可能性があります。
試料中の塩類や界面活性剤も、電場やpH勾配の形成を乱す原因になります。
前処理として脱塩や適切な可溶化を行うことで、再現性の向上につながるでしょう。
タンパク質が等電点付近で析出すると、きれいなスポットにならないこともあります。
尿素、チオ尿素、界面活性剤などを用いて可溶化を補助する条件が検討されることもあります。
等電点電気泳動では、タンパク質がpIの位置に自動的に集まりやすくなります。
pH勾配、試料の塩濃度、可溶化条件が分離結果を左右します。
等電点の調べ方と実務での活用
続いては等電点の調べ方と実務での活用を確認していきます。
配列情報からの予測
タンパク質のアミノ酸配列が分かっていれば、計算ツールを使って理論上の等電点を予測できます。
配列中の酸性残基と塩基性残基の数を数え、各残基の代表的なpKaを基に正味電荷を計算します。
pHを少しずつ変えながら正味電荷を求め、ゼロになる地点を探す方法です。
この予測値は、イオン交換クロマトグラフィーの条件設定や、緩衝液の初期検討に便利です。
たとえばpIが低いと予測されるタンパク質は、中性付近で負に帯電しやすいため、陰イオン交換担体との相互作用が期待できます。
pIが高いタンパク質では、同じpHで正に帯電しやすく、陽イオン交換担体を検討する場面があります。
ただし配列予測はあくまで出発点です。
リン酸化、アセチル化、糖鎖付加などの翻訳後修飾があると、実際の等電点は変化することがあります。
特にリン酸化は負電荷を増やすため、タンパク質のpIを低い側へ動かす要因になりやすい点が重要です。
実験による測定
実験的に等電点を調べる代表的な方法は、等電点電気泳動です。
pH勾配を持つゲルやストリップに試料を導入し、電圧をかけることでタンパク質をそれぞれのpI位置に集めます。
既知のpH位置と試料のバンドまたはスポットの位置を比較すれば、等電点を推定できます。
キャピラリー等電点電気泳動のように、少量試料で高い分離能を目指す手法もあります。
等電点を直接測るだけでなく、異なるpHでの溶解度や電荷状態を調べて推定する方法もあります。
精製工程では、pHを段階的に変化させ、どの条件で目的タンパク質が溶けるか、沈殿するかを確認することがあります。
ただし沈殿のpHが必ず正確なpIを示すわけではありません。
塩濃度や共存物質、濃度、温度の影響を受けるため、複数の情報を組み合わせて判断することが望ましいでしょう。
食品と医薬品での応用
食品分野では、タンパク質の等電点を利用して食感、分散性、凝固性を調整します。
大豆タンパク質や乳タンパク質は、pH条件によって溶け方と凝集のしやすさが変化します。
飲料にタンパク質を配合する場合は、酸味料によってpHが等電点へ近づき、濁りや沈殿が生じることがあります。
製品の見た目や口当たりを安定させるためには、pH、糖、塩、乳化剤、加熱条件を総合的に設計する必要があります。
医薬品分野では、抗体や酵素などのタンパク質製剤において、凝集の抑制が品質管理の重要課題です。
保存中にpHが変化して等電点へ近づくと、粒子形成や活性低下のリスクが高まることがあります。
そのため処方設計では、目的タンパク質のpIだけでなく、凍結乾燥の有無、容器表面との相互作用、振とう時のストレスまで検討されます。
等電点は教科書上の数値ではなく、製品の安定性と品質に関わる実用的な情報です。
等電点を理解するためのまとめ
最後に等電点を理解するためのまとめを確認していきます。
等電点とは、アミノ酸やタンパク質に含まれる正電荷と負電荷がつり合い、正味電荷がゼロになるpHです。
中性を意味する言葉ではなく、分子ごとに異なる値を持つ点が大切です。
pHが等電点より低いと分子は正に帯電しやすく、等電点より高いと負に帯電しやすくなります。
この電荷の変化は、電気泳動での移動方向、イオン交換クロマトグラフィーでの結合、溶解性、凝集性に影響します。
アミノ酸のpIは官能基のpKaから考えられ、側鎖に酸性基または塩基性基があるかどうかで計算の考え方が変わります。
タンパク質では多数の残基、立体構造、翻訳後修飾が関係するため、理論値と実測値の両方を意識することが重要です。
特に等電点付近では分子間反発が弱まり、溶解度が下がって凝集しやすくなる場合があります。
保存、精製、食品加工、製剤設計では、等電点からの距離とタンパク質の安定性を見ながらpH条件を選ぶ必要があります。
pH、pKa、正味電荷、双性イオンという言葉を一緒に整理すると、等電点の仕組みはぐっと理解しやすくなるでしょう。