
塩基性アミノ酸の等電点はなぜ高い?側鎖の電離とpKaの関係を解説!
アミノ酸の等電点は、タンパク質の分離、電気泳動、緩衝液の調製などを理解するうえで欠かせない数値です。
なかでもリシン、アルギニン、ヒスチジンなどの塩基性アミノ酸は、酸性アミノ酸や中性アミノ酸より等電点が高くなります。
その理由は、アミノ基とカルボキシ基だけでなく、正電荷を帯びやすい側鎖が電離に参加するためです。
本記事では、pKaと電離平衡の基本から、塩基性アミノ酸の等電点が高くなる流れまで、式と具体例を交えて整理します。
塩基性アミノ酸の等電点の結論
それではまず塩基性アミノ酸の等電点について解説していきます。
等電点が示す電荷のつり合い
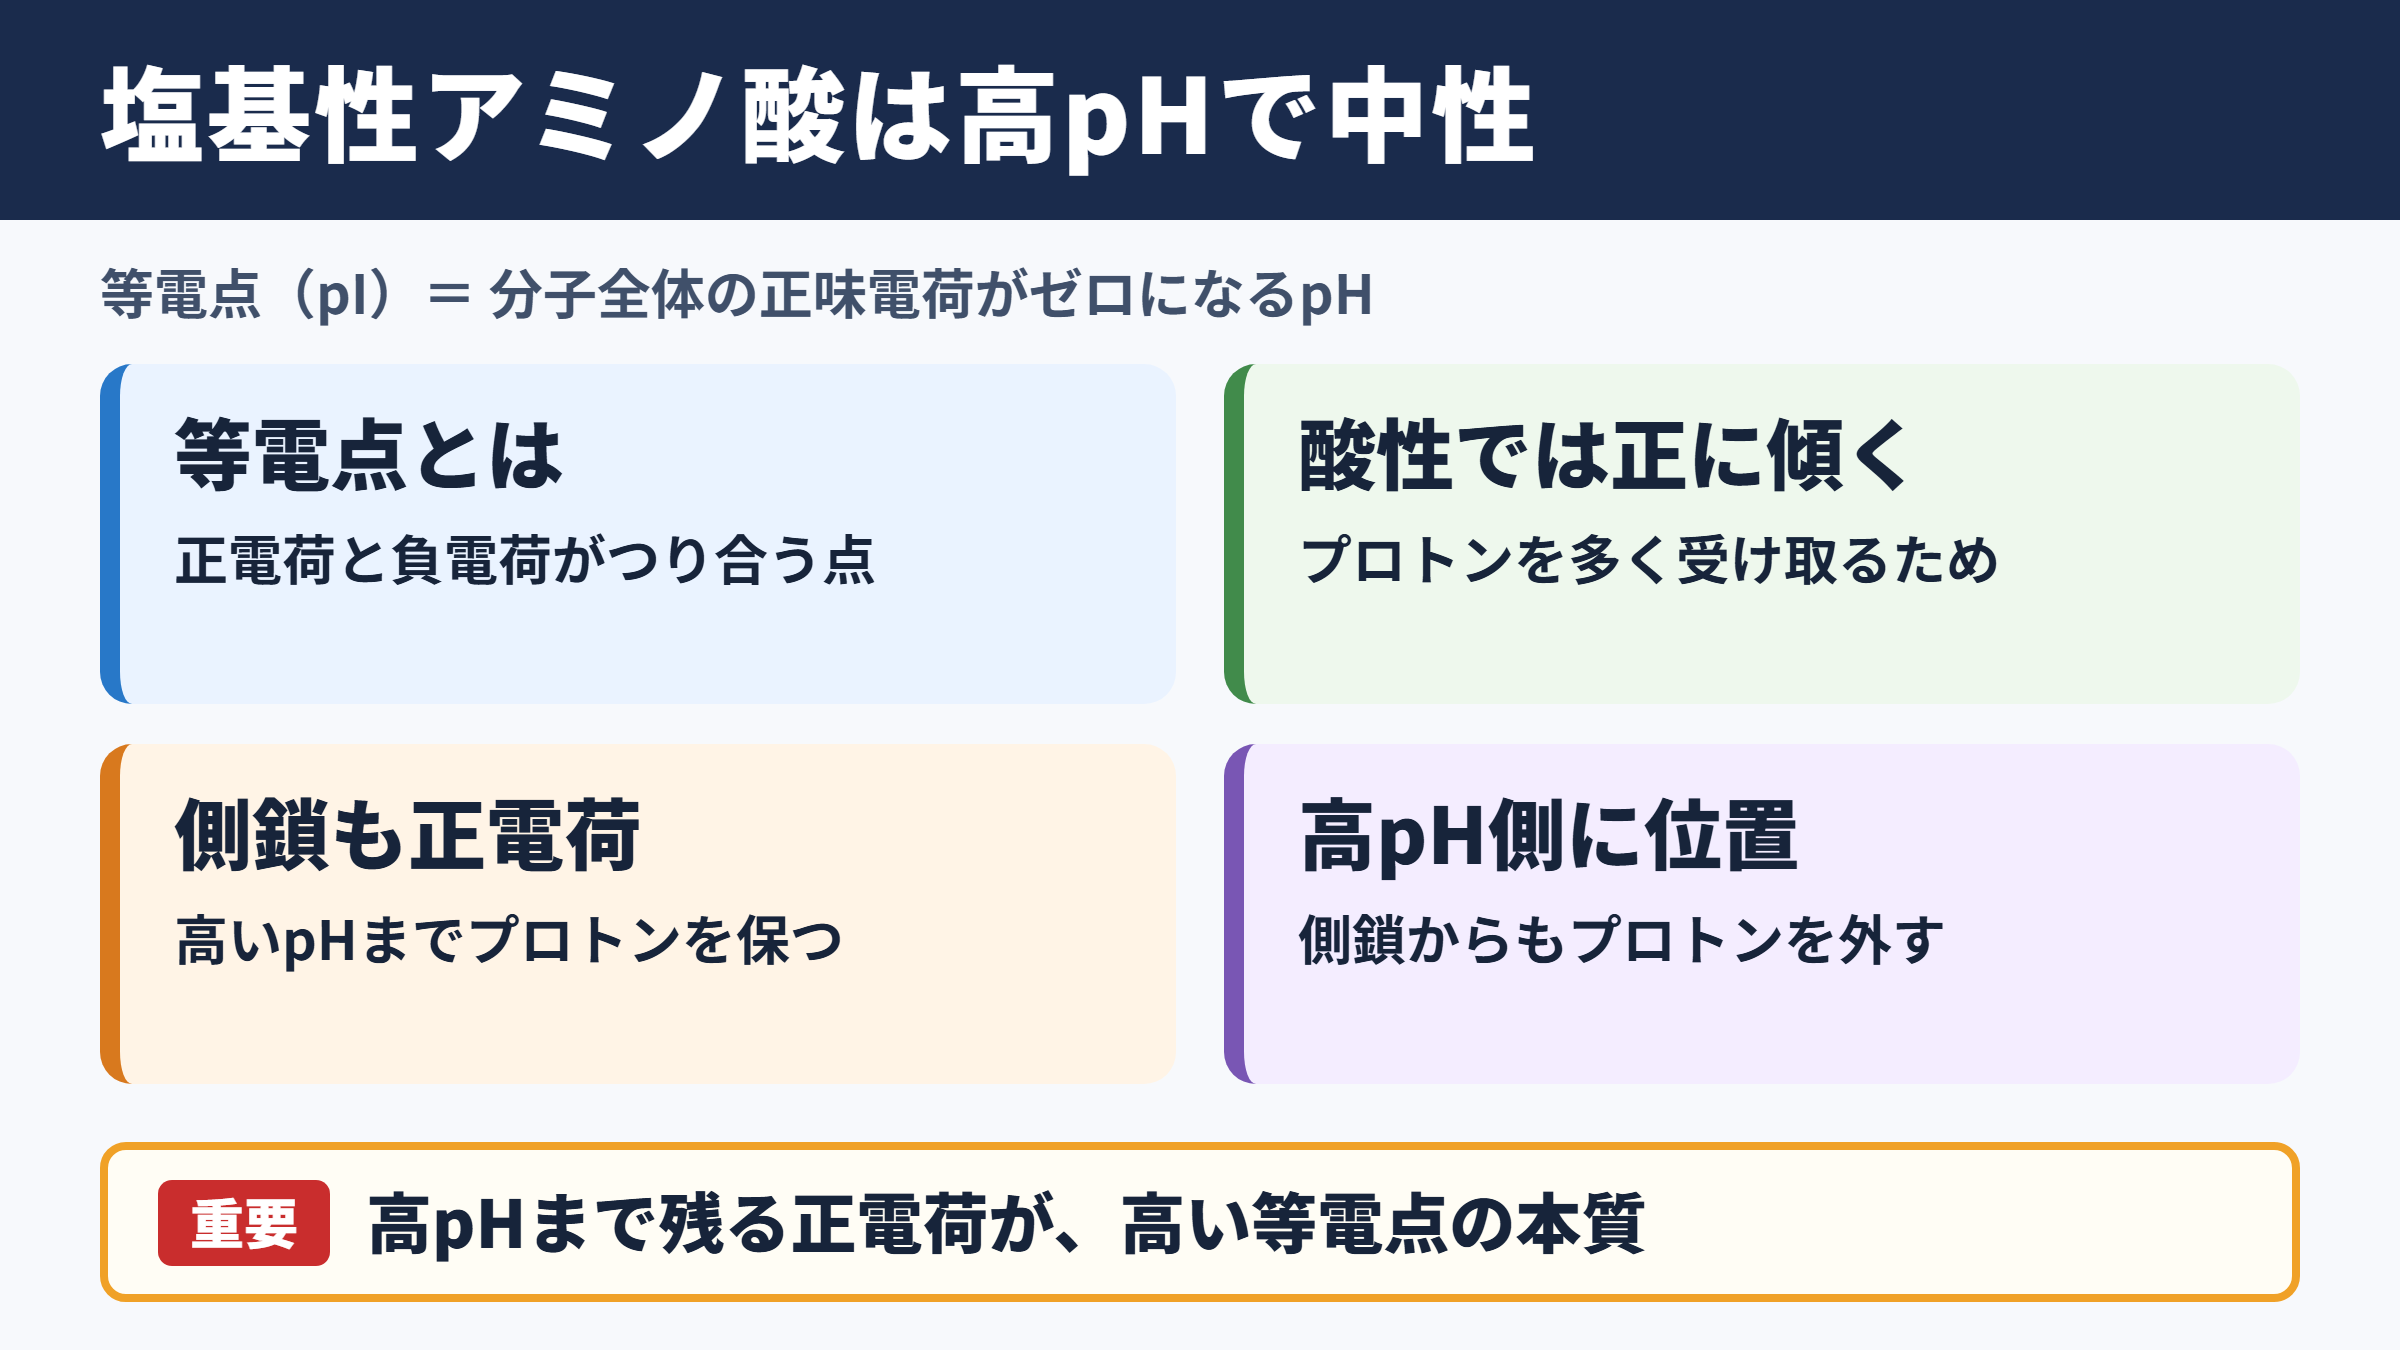
等電点とは、分子全体の正電荷と負電荷がつり合い、見かけ上の電荷がゼロになるpHのことです。
英語ではisoelectric pointといい、一般にpIと表記されます。
アミノ酸は水溶液中で、カルボキシ基が負電荷を帯びたり、アミノ基が正電荷を帯びたりします。
そのため、同じアミノ酸でも溶液のpHによって全体の電荷は変化します。
強い酸性条件ではプロトンを多く受け取るため、分子は正に傾きます。
一方で強い塩基性条件ではプロトンを失いやすくなり、負に傾く仕組みです。
この変化の途中で、正味の電荷がゼロになる地点が現れます。
そこが等電点であり、電荷がまったく存在しないという意味ではありません。
正電荷と負電荷が分子内で同数になっている状態と考えると理解しやすいでしょう。
塩基性アミノ酸で高い値になる理由
塩基性アミノ酸には、通常のアミノ基とは別に、プロトンを受け取って正電荷を持ちやすい側鎖があります。
たとえばリシンの側鎖にはεアミノ基があり、アルギニンの側鎖にはグアニジノ基があります。
これらの側鎖は比較的高いpHまでプロトンを保持しやすく、分子全体を正に保つ働きをします。
したがって、分子の正味電荷をゼロにするには、溶液のpHをより高くして側鎖からもプロトンを外す必要があります。
このため、塩基性アミノ酸の等電点は高pH側に位置します。
塩基性アミノ酸の等電点が高い本質は、正電荷を持つ側鎖が高いpHまで残る点にあります。
反対に、酸性アミノ酸では負電荷を持つ側鎖があるため、正味電荷がゼロになるのは低いpH側です。
中性アミノ酸は、主にαカルボキシ基とαアミノ基の電離で電荷が決まり、その中間的な等電点を示します。
代表的な等電点の比較
アミノ酸の種類ごとに等電点を比べると、側鎖の性質が数値に反映されていることがわかります。
以下の値は代表的な目安であり、温度、イオン強度、測定条件によってわずかに変わる場合があります。
| アミノ酸 | 側鎖の特徴 | 等電点の目安 | 分類 |
|---|---|---|---|
| グリシン | 電離しにくい水素 | 約5.97 | 中性 |
| アラニン | メチル基 | 約6.01 | 中性 |
| アスパラギン酸 | カルボキシ基 | 約2.77 | 酸性 |
| グルタミン酸 | カルボキシ基 | 約3.22 | 酸性 |
| ヒスチジン | イミダゾール基 | 約7.59 | 塩基性 |
| リシン | εアミノ基 | 約9.74 | 塩基性 |
| アルギニン | グアニジノ基 | 約10.76 | 塩基性 |
特にアルギニンの等電点が高いことからも、グアニジノ基が正電荷を安定して保つ性質を読み取れます。
等電点の大小は、側鎖がどのpHで電離するかと深く結び付いています。
アミノ酸の電離状態と双性イオン
続いてはアミノ酸の電離状態を確認していきます。
カルボキシ基とアミノ基の電離
アミノ酸の基本骨格には、酸性の性質を持つカルボキシ基と、塩基性の性質を持つアミノ基があります。
カルボキシ基はプロトンを失うと、カルボキシラートイオンとして負電荷を持ちます。
アミノ基はプロトンを受け取ると、アンモニウムイオンとして正電荷を持つ構造です。
中性付近の水溶液では、多くのアミノ酸がカルボキシラートイオンとアンモニウムイオンを同時に持ちます。
このように、一つの分子に正負の電荷が共存する形を双性イオンと呼びます。
双性イオンは内部塩とも呼ばれ、水に溶けたアミノ酸の代表的な存在形です。
一般的なアミノ酸の電離は、酸性側では正味プラス、中性付近では双性イオン、塩基性側では正味マイナスへ移ります。
ただし、側鎖にも電離基がある場合は、変化が二段階では終わりません。
塩基性アミノ酸では、側鎖の塩基性基まで含めて電荷を数えることが重要です。
pHによる正味電荷の変化
低いpHでは溶液中のプロトン濃度が高く、アミノ酸はプロトン化しやすい状態です。
カルボキシ基はCOOHとして存在し、アミノ基や塩基性側鎖は正電荷を持ちやすくなります。
pHを上げると、まず比較的酸性の強いカルボキシ基からプロトンが外れます。
さらにpHが高くなると、αアミノ基、続いて側鎖の塩基性基からもプロトンが外れていきます。
電荷の変化を追うときは、各段階で正電荷と負電荷の合計を数える方法が有効です。
たとえばリシンは強い酸性条件で、αアミノ基と側鎖アミノ基がともに正電荷を持ちます。
カルボキシ基が脱プロトン化しても、分子はまだ正に傾いた状態です。
その後、αアミノ基や側鎖アミノ基が電離する段階で、ようやく正味電荷がゼロへ近づきます。
等電点を探すときは、正味電荷ゼロをはさむ二つの電離段階を見つけることが基本です。
双性イオンだけでは説明できない側鎖
双性イオンという言葉だけでアミノ酸の電荷を考えると、塩基性アミノ酸では見落としが生じます。
リシンやアルギニンは、αカルボキシ基が負電荷になり、αアミノ基が正電荷になっていても、側鎖がさらに正電荷を持つことがあります。
この場合、分子内に正電荷が二つ、負電荷が一つあるため、正味電荷はプラス一です。
見た目には正負の電荷を併せ持つ双性イオンでも、等電点に達しているとは限りません。
ヒスチジンでも同様に、イミダゾール基のプロトン化状態を確認する必要があります。
側鎖の電離を含めて考えることで、構造式と等電点の数値が一本の線でつながります。
pKaとプロトン解離平衡
続いてはpKaとプロトン解離平衡を確認していきます。
pKaが表す電離しやすさ
pKaは、酸がプロトンを放出する平衡の位置を示す指標です。
pKaが小さいほど、その基は比較的低いpHでもプロトンを放出しやすい性質があります。
反対にpKaが大きい基は、プロトンを保持しやすく、より高いpHになってから脱プロトン化します。
塩基性アミノ酸の側鎖では、この高いpKaが等電点を押し上げる要因です。
pKaは、酸型と塩基型の濃度が等しいときのpHとしても理解できます。
ヘンダーソン・ハッセルバルヒの式では、pHはpKaに塩基型濃度と酸型濃度の比の対数を加えた値として表されます。
pHがpKaと等しいとき、プロトンを持つ形と失った形はほぼ同じ割合です。
pHがpKaより十分低いならプロトン化した形が多く、十分高いなら脱プロトン化した形が多くなります。
この関係を使えば、特定のpHで側鎖がどの程度正電荷を持つかを予測できます。
リシンにおける三つのpKa
リシンには、αカルボキシ基、αアミノ基、側鎖のεアミノ基という三つの主要な電離基があります。
代表的なpKaの目安は、カルボキシ基が約2.2、αアミノ基が約9.0、εアミノ基が約10.5です。
酸性側からpHを上げると、最初にカルボキシ基が脱プロトン化します。
この時点では二つのアミノ基が正電荷を保っているため、正味電荷はなおプラスです。
次にαアミノ基が脱プロトン化すると、正電荷一つと負電荷一つがつり合います。
この電荷ゼロの状態は、αアミノ基と側鎖アミノ基の電離段階の間に存在します。
したがってリシンの等電点は、この二つのpKaの平均で近似できます。
リシンの等電点の近似式は、pIがおおよそαアミノ基のpKaと側鎖アミノ基のpKaの平均となる考え方です。
約9.0と約10.5の中間であるため、リシンのpIはおよそ9.7付近になります。
カルボキシ基のpKaを平均に使わない点が、塩基性アミノ酸を計算する際の大切な注意点です。
アルギニンとヒスチジンの違い
アルギニンの側鎖であるグアニジノ基は、共鳴によって正電荷が安定化されやすい特徴を持ちます。
そのため側鎖のpKaは約12.5と高く、生理的pH付近でもほとんどがプロトン化した状態です。
アルギニンがタンパク質中で正電荷を担いやすい理由も、この性質にあります。
ヒスチジンのイミダゾール基のpKaは約6付近で、リシンやアルギニンより低めです。
生理的pH付近では、ヒスチジン側鎖はプロトン化型と脱プロトン化型の両方が存在しやすくなります。
この性質は、酵素反応でプロトンの受け渡しに関わる理由の一つです。
塩基性アミノ酸と一括りにしても、側鎖の構造とpKaによって電荷の残り方は異なります。
塩基性側鎖の種類と電荷
続いては塩基性側鎖の種類と電荷を確認していきます。
リシンのεアミノ基
リシンは、炭素鎖の先端にεアミノ基を持つアミノ酸です。
この基はプロトンを受け取ると、アンモニウムイオンとして正電荷を帯びます。
側鎖が柔軟に伸びるため、タンパク質表面の酸性残基やDNAのリン酸基との相互作用にも関わります。
ヒストンに含まれるリシンがDNAとの結合に寄与することも、正電荷から説明できます。
リシンの側鎖pKaは高く、中性付近では多くが正電荷を保ちます。
その結果、pHを上げてもすぐには分子全体の電荷がゼロになりません。
リシンの高いpIは、末端アミノ基ではなく側鎖アミノ基も持つことが背景です。
アルギニンのグアニジノ基
アルギニンのグアニジノ基は、塩基性アミノ酸の中でも特に強く正電荷を保つ側鎖です。
プロトン化したグアニジニウムイオンでは、正電荷が複数の窒素原子に分散します。
電荷が共鳴で安定化されるため、プロトンを失いにくく、高いpKaを示します。
このため、アルギニンの等電点は代表的なアミノ酸の中でも非常に高い値です。
タンパク質と核酸の結合部位、リン酸基を含む分子との認識部位でも、アルギニン残基はよく見られます。
アルギニンではグアニジノ基の正電荷が高pHまで維持されるため、等電点も強く塩基性側へ移動します。
単に窒素原子が多いから高いのではなく、プロトン化後の電荷が安定であることが重要です。
ヒスチジンのイミダゾール基
ヒスチジンの側鎖は、五員環構造を持つイミダゾール基です。
リシンやアルギニンより塩基性は弱いものの、電離可能な側鎖を持つため分類上は塩基性アミノ酸に含まれます。
ヒスチジンの等電点は約7.6で、リシンやアルギニンほど高くありません。
それでも中性アミノ酸より高い値を示すのは、側鎖が一定の割合で正電荷に寄与するためです。
イミダゾール基のpKaが生体内のpHに近いことは、酵素の活性中心で働きやすい理由にもなります。
pHの小さな変動に応じてプロトンを受け渡せるため、酸塩基触媒に適した性質といえるでしょう。
等電点の求め方と計算手順
続いては等電点の求め方と計算手順を確認していきます。
正味電荷ゼロをはさむpKaの選択
等電点を近似計算する際は、すべてのpKaを機械的に平均するわけではありません。
正味電荷がゼロの状態をはさむ、二つのpKaを選びます。
中性アミノ酸では、カルボキシ基が脱プロトン化した後、αアミノ基が脱プロトン化する間で電荷ゼロになります。
したがって、一般にはカルボキシ基のpKaとαアミノ基のpKaを平均します。
酸性アミノ酸では、二つあるカルボキシ基の電離の間で電荷ゼロになりやすい構造です。
塩基性アミノ酸では、αアミノ基と塩基性側鎖のpKaの間で電荷ゼロになります。
この選択を誤ると、計算結果は大きくずれてしまいます。
等電点の計算では、アミノ酸の分類を先に確認し、電荷ゼロを通過する二つのpKaを探す順序が確実です。
リシンの電荷変化の追跡
リシンの計算では、低pHから電荷の変化を順番に追うと判断しやすくなります。
| pHの領域 | 主な変化 | 正味電荷の目安 |
|---|---|---|
| 強い酸性 | カルボキシ基はCOOH、二つのアミノ基はプロトン化 | プラス二 |
| カルボキシ基のpKa通過後 | カルボキシ基がCOOマイナスへ変化 | プラス一 |
| αアミノ基のpKa通過後 | αアミノ基が脱プロトン化 | ゼロ |
| 側鎖アミノ基のpKa通過後 | εアミノ基が脱プロトン化 | マイナス一 |
正味電荷ゼロの状態は、三番目と四番目の状態の境界付近にあります。
よって、用いるべきなのはαアミノ基と側鎖アミノ基のpKaです。
この方法なら、暗記だけに頼らず、初めて見る電離性側鎖を持つ分子にも応用できます。
まず電荷表を書き、ゼロをはさむ二つの変化を探すことが計算の近道です。
計算時に注意したい条件
教科書やデータベースによって、pKaやpIの小数点以下が少し異なることがあります。
これは測定温度、溶媒、塩濃度、イオン強度などが平衡に影響するためです。
試験問題では、問題文で与えられたpKaを使うことが原則となります。
実験では、単純平均はあくまで近似値であり、滴定曲線や電気泳動の結果と合わせて評価することもあります。
また、ペプチドやタンパク質では、N末端、C末端、各アミノ酸側鎖のすべてが電荷に関与します。
周囲のアミノ酸残基によってpKaが変化する場合もあるため、単体アミノ酸の値をそのまま当てはめられないことがあります。
基礎問題では単体のpKaを使い、実際の生体分子では環境効果も考慮するという切り分けが大切です。
タンパク質分析における等電点
続いてはタンパク質分析における等電点を確認していきます。
電気泳動での移動方向
電気泳動では、分子が持つ正味電荷によって電場中を移動します。
溶液のpHがタンパク質の等電点より低い場合、タンパク質は正に帯電しやすくなります。
この状態では、負極側へ引かれる挙動を示します。
反対にpHが等電点より高ければ、タンパク質は負に帯電し、正極側へ移動します。
pHが等電点とほぼ等しいときは、正味電荷が小さく、電場による移動も小さくなります。
等電点電気泳動では、この性質を利用してタンパク質をpIの違いで分離します。
pHとpIの大小関係を知れば、電気泳動での電荷と移動の傾向を予測できます。
溶解性と等電点沈殿
タンパク質は等電点付近で溶解性が低下しやすい傾向があります。
正味電荷が小さくなると、分子同士の電気的な反発が弱くなるためです。
反発が弱まると、疎水性相互作用などによって分子が集まりやすくなり、沈殿や凝集につながることがあります。
この現象は等電点沈殿と呼ばれ、タンパク質の精製や食品加工でも利用されます。
たとえば乳タンパク質のカゼインは、等電点付近で凝集しやすい性質を持ちます。
ただし、溶解性はpIだけで決まるものではありません。
塩濃度、温度、界面活性剤、変性の有無、糖鎖なども大きく影響します。
等電点付近ではタンパク質の電気的反発が小さくなり、凝集しやすくなるため、緩衝液のpH設定が重要です。
生化学実験でのpH設定
酵素やタンパク質を扱う実験では、pH設定を目的に合わせて選ぶ必要があります。
試料を可溶化したい場合は、等電点からある程度離れたpHの緩衝液を選ぶことが多いでしょう。
一方で、目的タンパク質を選択的に沈殿させたい場合は、pI付近へpHを調整する方法が検討されます。
塩基性アミノ酸を多く含むタンパク質はpIが高くなる傾向があり、中性付近で正電荷を持ちやすくなります。
ただし、タンパク質全体のpIは、リシンやアルギニンの数だけで単純に決まりません。
酸性残基、末端基、立体構造、局所環境を含めた全体のバランスが必要です。
アミノ酸単体の理解は、複雑なタンパク質の性質を読み解くための出発点になります。
塩基性アミノ酸の等電点のまとめ
塩基性アミノ酸の等電点が高いのは、側鎖にあるアミノ基、グアニジノ基、イミダゾール基などが正電荷に寄与するためです。
側鎖のpKaが高いほどプロトン化状態が高pHまで続き、分子全体の正味電荷をゼロにするには、より塩基性の条件が必要になります。
リシンではαアミノ基とεアミノ基、アルギニンではαアミノ基とグアニジノ基のpKaが、等電点の近似に重要です。
一方、ヒスチジンは側鎖のpKaが比較的低いため、塩基性アミノ酸の中では中性に近い等電点を示します。
等電点は正味電荷ゼロをはさむ二つのpKaから考えると、分類ごとの計算方法を無理なく理解できます。
電気泳動、タンパク質精製、緩衝液の選択でも、pHとpIの関係は重要な判断材料です。
側鎖の構造、電離状態、pKaを一緒に見ることで、塩基性アミノ酸の高い等電点を確かな知識として活用できるでしょう。