
等電点電気泳動とは?pH勾配で分離される原理をわかりやすく解説!
タンパク質やペプチドを分析するとき、分子の大きさだけでは区別しにくい試料があります。
そのような場面で役立つ方法が、分子ごとの電荷の変化に注目する等電点電気泳動です。
等電点電気泳動は、試料が持つ等電点とpH勾配を利用して、タンパク質を非常に高い分解能で分離する電気泳動法として知られています。
名前だけを見ると難しく感じられるかもしれませんが、分子が自分にとって電荷ゼロになる場所へ移動する仕組みと考えると理解しやすいでしょう。
この記事では、等電点電気泳動の基本原理、pH勾配の役割、実験で使われる担体やゲル、二次元電気泳動との関係、測定時の注意点まで順を追って解説します。
等電点電気泳動の意味と分離原理
それではまず等電点電気泳動の意味と、分子が分離される基本的な原理について解説していきます。
等電点に着目する電気泳動法
等電点電気泳動は、英語ではIsoelectric Focusingと呼ばれ、一般にIEFと略されます。
タンパク質やペプチドのように、酸性条件と塩基性条件で電荷が変わる両性電解質を、等電点の違いによって分離する方法です。
等電点とは、分子全体として正電荷と負電荷がつり合い、見かけ上の電荷がゼロになるpHの値を指します。
たとえば酸性アミノ酸を多く含むタンパク質は低いpHで等電点を持ちやすく、塩基性アミノ酸を多く含むタンパク質は高いpH側に等電点を持ちやすい傾向があります。
通常の電気泳動では、試料の分子量や電荷量、形状などが移動距離に影響します。
一方の等電点電気泳動では、ゲル内に連続的なpH勾配を作り、その中で各タンパク質を自分の等電点の位置まで移動させます。
目的の位置に達した分子は正味電荷を失うため、電場によってそれ以上移動しにくくなります。
この集束という現象が、等電点電気泳動の大きな特徴です。
pH勾配内で起こる電荷変化
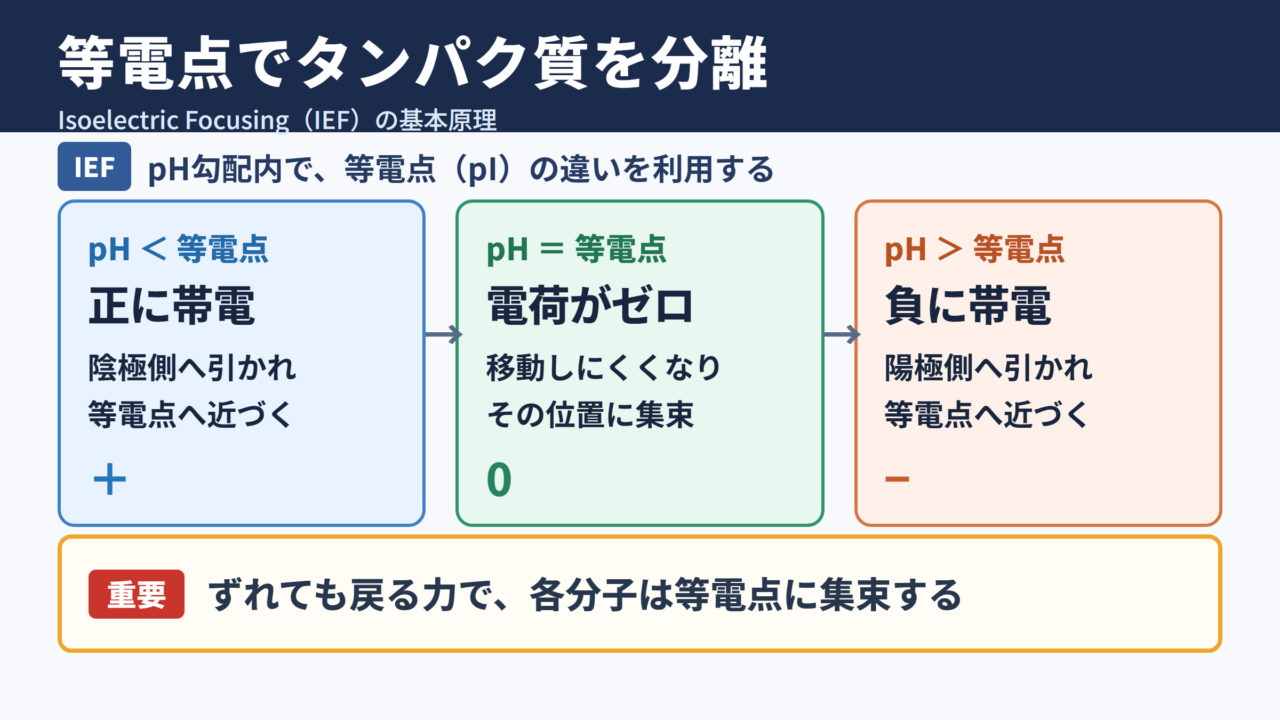
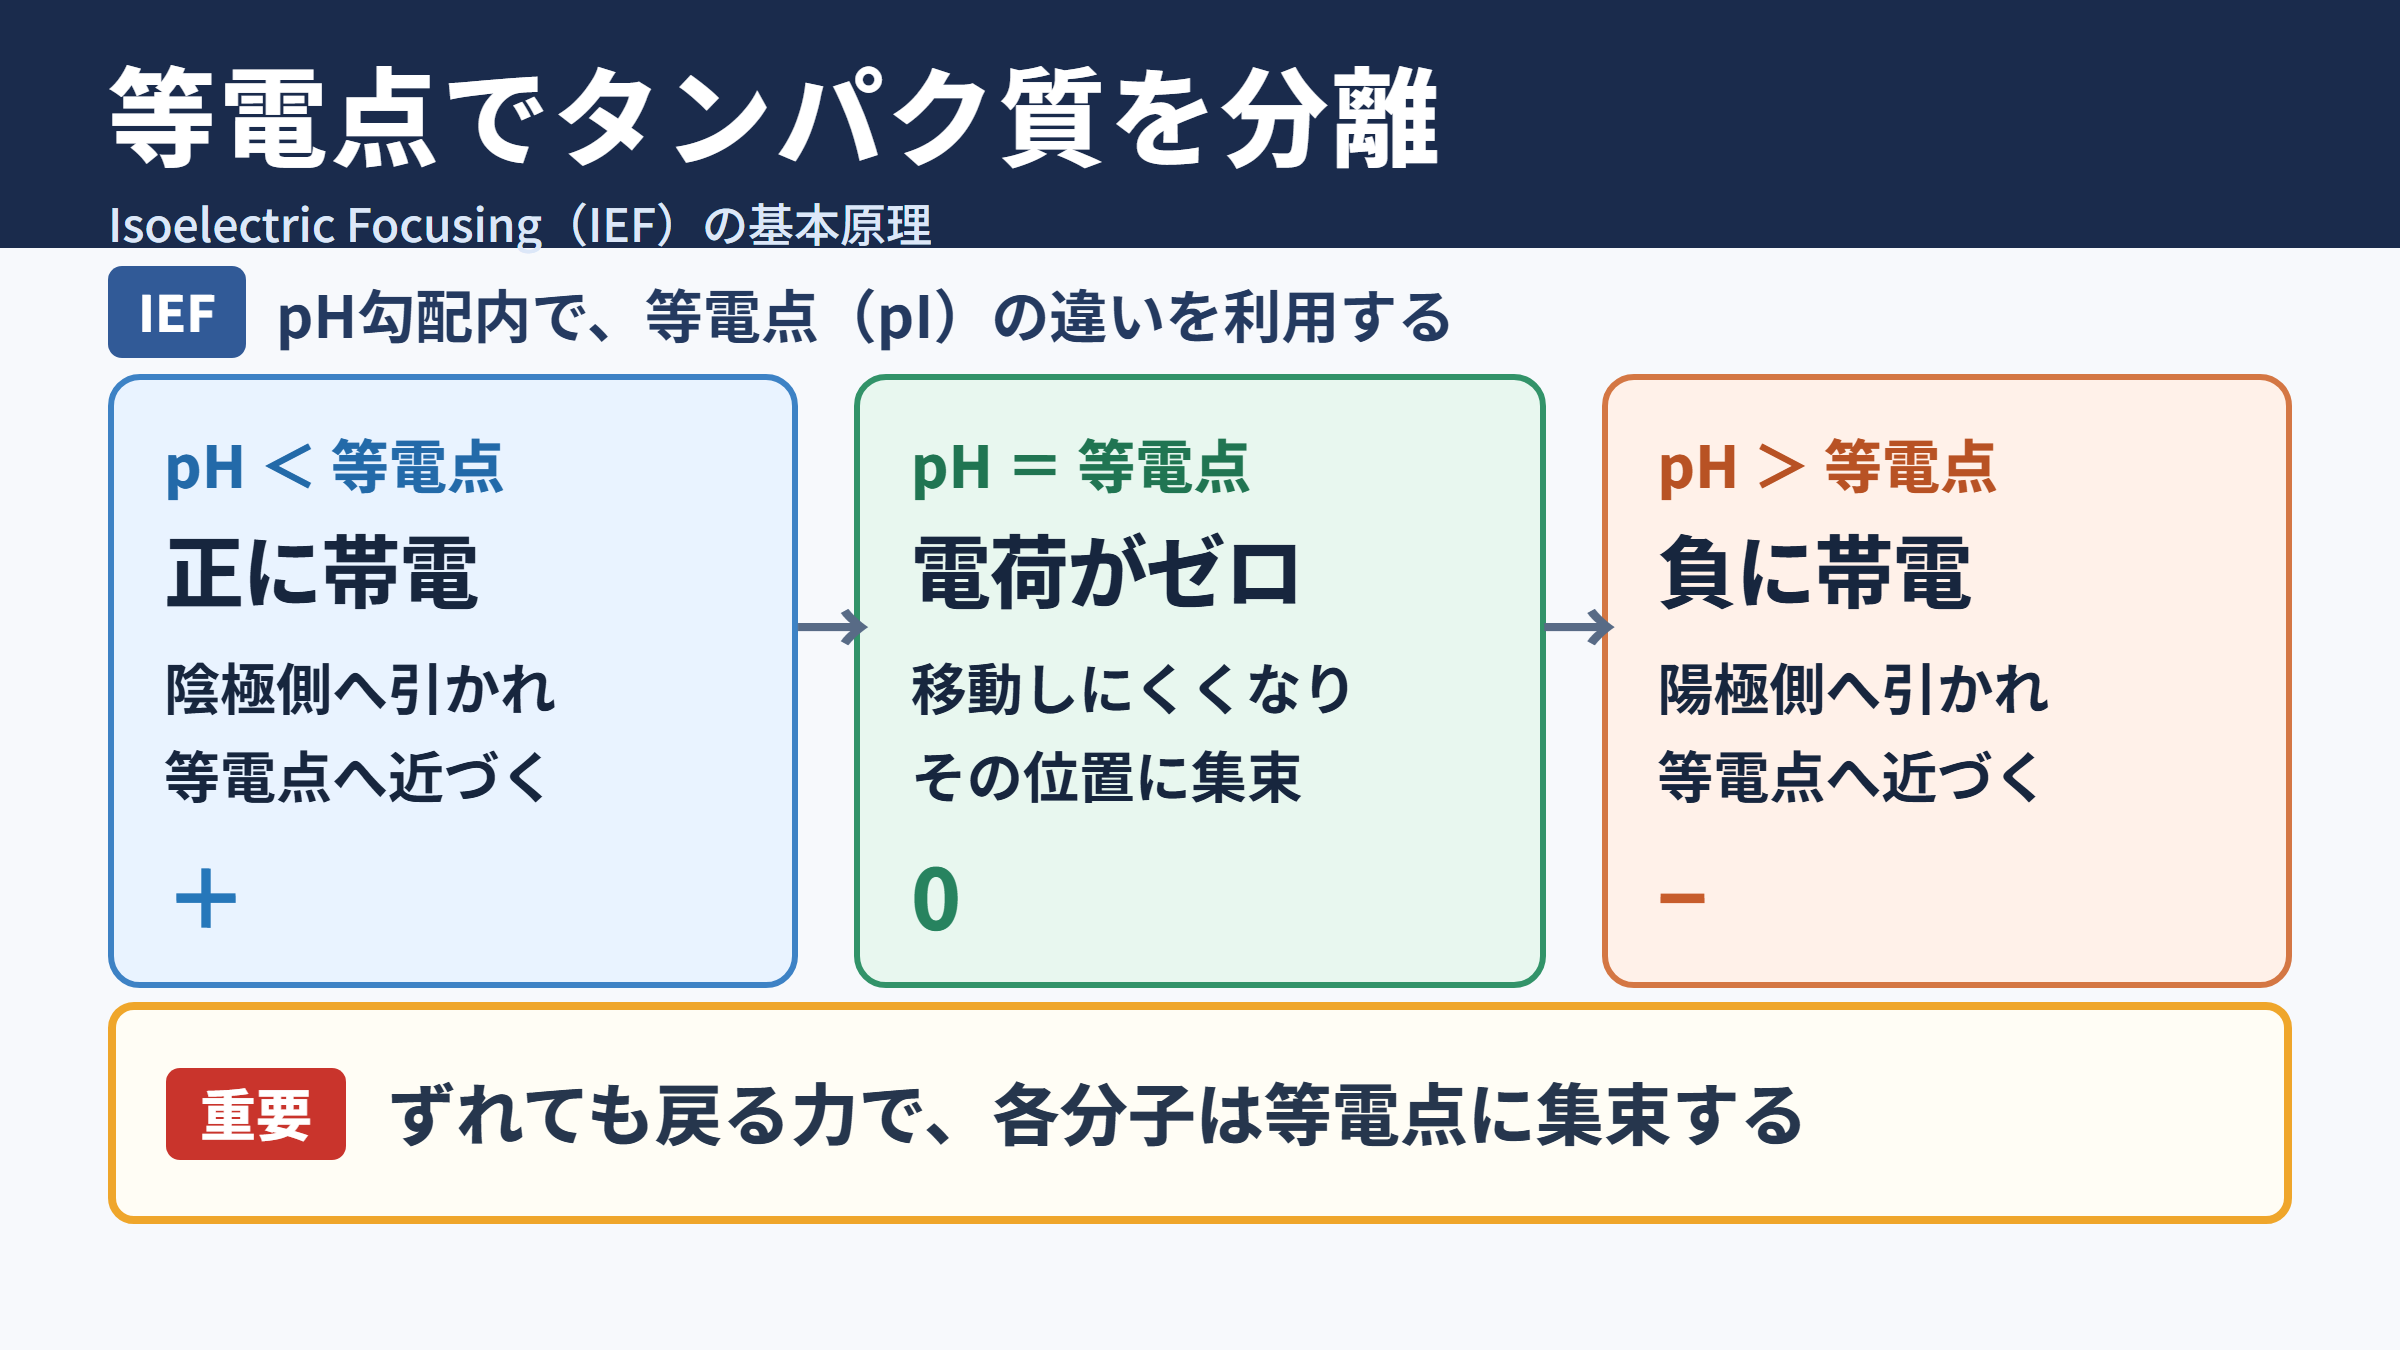
pH勾配があるゲルに電圧をかけると、試料分子は電荷に応じて陽極または陰極へ移動します。
タンパク質が自分の等電点より低いpHの場所にいる場合、分子は正に帯電しやすく、陰極側へ引かれます。
反対に、等電点より高いpHの場所にいると負に帯電しやすく、陽極側へ移動します。
つまり、どちらの方向へ少しずれても、分子は最終的に自分の等電点へ戻される力を受けることになります。
pHが等電点より低い場合は正に帯電し、陰極側へ移動します。
pHが等電点より高い場合は負に帯電し、陽極側へ移動します。
pHと等電点が一致する場所では正味電荷がほぼゼロとなり、分子はその位置に集束します。
この戻る力が働くため、バンドは単に分かれるだけでなく、狭い領域へ濃縮されます。
等電点に近づくほど移動性が低下し、離れると再び移動性が増すという性質が、高い分離能を生み出します。
わずかなpIの差を持つタンパク質同士でも、条件が整えば別々のバンドとして観察できるでしょう。
集束と通常のゾーン電気泳動の違い
通常のゾーン電気泳動では、分子が電場の中を一方向へ移動し、時間とともにバンドが広がることがあります。
拡散、対流、試料量の過多などが重なると、境界がぼやけて判定しにくくなる場合もあります。
等電点電気泳動では、試料が等電点から外れた位置へ拡散しても、電荷を帯びて元の位置へ戻ろうとします。
そのため、一定の条件下ではバンドが細く保たれやすく、自己修復的に集束する分離として扱われます。
ただし、電圧をむやみに高くすればよいわけではありません。
ジュール熱による温度上昇、ゲルの乾燥、タンパク質の変性、pH勾配の乱れが起これば、かえって再現性が低下します。
等電点電気泳動の分離軸は分子量ではなく等電点です。
同程度の大きさを持つタンパク質でも、等電点が異なれば分離できる可能性があります。
逆に等電点がほぼ同じ試料は、分子量が違っていてもIEFだけでは区別しにくい点に注意が必要です。
pH勾配の形成方法と固定化技術
続いてはpH勾配がどのように作られ、分離性能にどう関わるのかを確認していきます。
担体両性電解質によるpH勾配
初期の等電点電気泳動では、担体両性電解質と呼ばれる低分子化合物の混合物を使ってpH勾配を形成していました。
担体両性電解質は、それぞれ異なる等電点を持つ両性の分子群です。
電場をかけると各成分が自らの等電点へ移動して並び、ゲル内に連続的なpH勾配ができます。
この方法は比較的柔軟にpH範囲を選べる一方で、長時間の通電による陰極側への偏りや、試料との相互作用が問題になることもあります。
また、勾配を毎回再現するには、試薬の品質、調製操作、通電条件を安定させる工夫が欠かせません。
固定化pH勾配ゲルの特徴
現在では、固定化pH勾配を備えたゲルストリップが広く利用されています。
固定化pH勾配は、Immobilized pH Gradientの頭文字からIPGとも呼ばれます。
ゲルのポリアクリルアミド骨格に、酸性基または塩基性基を持つ化合物を化学的に結合させることで、pH勾配を固定します。
pHを決める成分がゲルに固定されているため、通電中に勾配が動きにくく、高い再現性を得やすい方式です。
市販のIPGストリップには、広いpH範囲をカバーするタイプと、狭い範囲を詳細に分けるタイプがあります。
探索的な解析ではpH3から10程度の広域ストリップを使い、目的タンパク質が見つかった後は狭域ストリップへ切り替える方法がよく採用されます。
| pH勾配の種類 | 主な特徴 | 向いている用途 |
|---|---|---|
| 担体両性電解質 | 条件の変更が比較的しやすい | 原理検討や特殊な勾配設定 |
| 広域IPG | 広い等電点範囲を一度に観察できる | 未知試料の概略解析 |
| 狭域IPG | 近い等電点の差を見分けやすい | アイソフォームや修飾体の比較 |
| 超狭域IPG | 非常に細かなpI差へ対応しやすい | 高分解能のプロテオーム解析 |
広域勾配と狭域勾配の選び方
pH勾配の範囲は、分析の目的によって選ぶ必要があります。
広域勾配は多数のタンパク質を一度に確認できるため、全体像をつかむ際に便利です。
ただし、同じストリップ長の中に広いpH範囲を収めるため、pI差の小さいバンド同士は近接しやすくなります。
狭域勾配では、限られたpH範囲を長い距離へ展開できるため、近縁タンパク質や翻訳後修飾による微小な電荷差を観察しやすくなります。
たとえばリン酸化はタンパク質の負電荷を増やすため、修飾前後で等電点が変化することがあります。
このような差を評価したい場合、目的タンパク質の予想pI周辺に絞った勾配が有効でしょう。
未知試料を広く調べる段階では広域pH勾配が使いやすい選択です。
候補タンパク質の等電点が予測できる場合は、その近辺を含む狭域勾配で再解析すると分離能が高まります。
勾配の選定は、必要な網羅性と必要な解像度のバランスで決めます。
タンパク質の電荷と等電点の関係
続いてはタンパク質がなぜpHによって電荷を変え、等電点が何によって決まるのかを確認していきます。
アミノ酸側鎖と電離基
タンパク質はアミノ酸が多数つながった高分子であり、末端のアミノ基やカルボキシル基だけでなく、側鎖にも電離する基を持っています。
アスパラギン酸やグルタミン酸の側鎖は酸性の性質を示しやすく、リシン、アルギニン、ヒスチジンなどは塩基性の性質を示しやすい成分です。
pHが低い環境では、酸性基はプロトンを受け取りやすく、塩基性基もプロトン化しやすいため、分子全体は正側へ傾きます。
pHが上がると酸性基はプロトンを放出して負電荷を持ち、徐々に分子全体の電荷が負側へ移ります。
正負の寄与がつり合う境目が等電点です。
アミノ酸配列が少し変わるだけでも等電点が変わるため、電気泳動像はタンパク質の性質を反映した情報になります。
等電点と分子量の独立性
等電点と分子量は混同されやすい項目ですが、基本的には別の性質です。
大きなタンパク質でも酸性アミノ酸が多ければ低いpIを示すことがあり、小さなタンパク質でも塩基性アミノ酸が多ければ高いpIを持つことがあります。
そのため、等電点電気泳動は分子サイズによる分離を行うSDSポリアクリルアミドゲル電気泳動とは異なる情報を与えます。
pIと分子量を別々の軸として扱える点は、複雑なタンパク質混合物を解析するうえで重要です。
分子量の近い複数のアイソフォームを区別したい場合や、電荷の変化を伴う修飾を追跡したい場合にも、この違いが活用されます。
等電点はタンパク質の大きさではなく、電離基の種類と数、周囲のpHによって決まる指標です。
遺伝子由来の配列差、脱アミド化、リン酸化、糖鎖修飾などは、等電点電気泳動のバンド位置に影響する場合があります。
ただし、すべての修飾が明瞭なpI変化を起こすわけではないため、ほかの分析法との組み合わせも大切です。
理論pIと実測pIの考え方
アミノ酸配列が分かっているタンパク質であれば、電離基の情報から理論上のpIを計算できます。
これは目的タンパク質がどのpH領域へ現れそうかを予測する際に便利です。
しかし、実測される位置が理論値と完全に一致するとは限りません。
タンパク質の立体構造、翻訳後修飾、結合している分子、変性剤の存在、測定条件などが電離状態に影響するためです。
特に生体試料では、同じ遺伝子産物でも複数の修飾状態が混在し、複数のスポットとして見えることがあります。
したがって、理論pIは出発点として有用ですが、最終的な判定は実験結果と対照試料を踏まえて行う姿勢が求められます。
等電点電気泳動の実験手順と試料調製
続いては実験の流れと、良好な分離像を得るための試料調製を確認していきます。
試料可溶化と夾雑物の除去
等電点電気泳動では、タンパク質を十分に可溶化し、目的のpH勾配内で安定に移動できる状態へ整える必要があります。
細胞や組織の抽出液には、核酸、脂質、多糖、塩類、界面活性物質などが含まれています。
これらは導電率を上げたり、タンパク質と結合したりして、集束を妨げる原因になります。
一般には尿素やチオ尿素などの変性剤、非イオン性または両性の界面活性剤、還元剤などを含む試料液が用いられます。
変性剤はタンパク質の高次構造をほどき、疎水性相互作用による凝集を抑える役割を持ちます。
還元剤はジスルフィド結合を切断し、分子間の架橋や凝集を防ぐために役立ちます。
塩の多い試料は脱塩処理を検討することが、きれいな集束像への近道です。
再水和とサンプル導入
IPGストリップを使う場合、乾燥状態のゲルに再水和液を吸収させる工程が必要になります。
再水和液には、ゲルを膨潤させるための成分に加え、試料を均一に導入するための成分が含まれます。
サンプルの導入方法には、再水和時に試料を含ませる方法と、ストリップ端部から試料を添加する方法があります。
どちらが適するかは、試料の性質、夾雑物の量、目的とする分離範囲によって異なります。
大量の試料を入れすぎると、バンドが横に広がったり、縦方向に筋が出たりすることがあります。
逆に試料量が少なすぎると、染色後に目的タンパク質を検出しにくくなります。
予備実験で適切なロード量を探ることが、再現性のある条件設定につながるでしょう。
試料調製では可溶化、脱塩、還元、夾雑物の低減を意識します。
導入量は多ければよいものではなく、染色法と目的タンパク質の量に合わせて調整します。
再水和が不十分な場合、局所的な泳動不良や不均一なスポットにつながることがあります。
電圧プログラムと泳動終了の判断
等電点電気泳動では、開始直後から高電圧をかけるのではなく、段階的に電圧を上げるプログラムが組まれることがあります。
低い電圧で試料をゲルへなじませた後、徐々に電圧を上げることで、急激な発熱や局所的な導電率の偏りを抑えやすくなります。
泳動条件は、到達電圧だけでなく、電圧と時間を掛け合わせた積算値でも管理されます。
十分な集束に達する前に終了すると、バンドが広くなり、pI差を正確に比較しにくくなります。
一方で、長時間の通電は乾燥、カルバミル化などの副反応、試料劣化を招くおそれがあります。
装置やゲルの推奨条件を基準にしつつ、試料に合わせて最適化することが大切です。
温度管理も重要であり、ジュール熱を抑えながら安定した電場を維持することが求められます。
二次元電気泳動と応用分野
続いては等電点電気泳動が二次元電気泳動でどのように使われ、どんな分析に役立つのかを確認していきます。
二次元電気泳動における第一方向
二次元電気泳動では、異なる分離原理を二段階で組み合わせます。
第一方向に等電点電気泳動を行い、タンパク質をpIの違いで分離します。
次に、そのゲルストリップをSDSポリアクリルアミドゲル電気泳動へ移し、第二方向で分子量に応じた分離を行います。
こうして得られる二次元ゲルでは、横方向または第一方向が等電点、縦方向または第二方向が分子量を表すことになります。
単一の電気泳動だけでは重なって見えるタンパク質も、二つの性質を使うことでスポットとして分離しやすくなります。
複雑な細胞抽出液や血清、組織試料などを比較する際に、二次元電気泳動は有用な手法です。
アイソフォームと翻訳後修飾の解析
同じ遺伝子から作られるタンパク質でも、選択的スプライシングや翻訳後修飾によって複数の分子種が生じることがあります。
これらはアイソフォームとして扱われ、分子量がほぼ同じでも電荷が異なる場合があります。
リン酸化、アセチル化、脱アミド化、糖鎖付加などは、タンパク質の電荷状態や見かけの分子量を変化させる要因です。
等電点電気泳動では、こうした変化がpIのずれとして観察される可能性があります。
一つのタンパク質が複数スポットへ分かれる現象は、単なる実験誤差とは限りません。
細胞状態、疾患、刺激応答に伴う修飾の変化を示していることもあるため、質量分析や抗体を用いた検出で確認する価値があります。
二次元電気泳動では、等電点電気泳動が電荷の差を担当し、SDS電気泳動が分子量の差を担当します。
二つの分離軸を組み合わせることで、タンパク質混合物の情報量を大きく増やせます。
スポットの位置変化を比較する際は、pIの変化なのか分子量の変化なのかを分けて考えることが重要です。
研究と品質管理における活用
等電点電気泳動は、基礎研究におけるプロテオーム解析だけでなく、医薬品、バイオ医薬品、食品、酵素製剤などの品質評価にも活用されています。
抗体医薬品のような生物由来製品では、電荷バリアントの違いが品質特性と関係する場合があります。
等電点の違いを利用した分離は、主成分と微量の電荷変異体を評価する手掛かりになります。
ただし、研究用のゲル電気泳動と、規格に基づく品質試験では、求められる妥当性確認や文書化の水準が異なります。
定量性、直線性、精度、特異性、システム適合性などを含めて、目的に応じた評価設計が必要です。
近年はキャピラリー等電点電気泳動のように、細いキャピラリー内でpH勾配を形成して測定する手法も利用されています。
少量試料での分析や自動化を求める場面では、有力な選択肢となるでしょう。
測定結果の読み方とトラブル対策
続いては泳動後のバンドやスポットの読み方と、分離不良が起きたときの対策を確認していきます。
バンド位置とpIの推定
等電点電気泳動の結果では、各バンドまたはスポットがpH勾配上のどこに位置するかを確認します。
既知のpIを持つ標準タンパク質やマーカーを併用すれば、目的バンドのおおよその等電点を推定できます。
ただし、ゲルの位置とpHの関係が完全に直線的とは限りません。
広域勾配では領域によって分離の密度が変わることがあり、端部では分離像が不安定になる場合もあります。
比較実験では、同じロットのストリップ、同じ通電条件、同じ染色法を可能な限りそろえることが重要です。
画像解析を行う際も、スポットの有無だけで判断せず、背景補正、位置補正、総量補正の方法を明確にしておくとよいでしょう。
横縞と縦縞が生じる原因
二次元電気泳動では、スポットが横方向または縦方向へ伸びる現象が見られることがあります。
横方向への広がりは、第一方向の集束不足、塩類の残存、試料過多、pH勾配の乱れなどと関係する場合があります。
縦方向への筋は、第二方向のSDS電気泳動における試料の移行不良、ゲルとの接触不足、試料成分の影響などが原因となることがあります。
同じ異常でも原因は一つとは限らないため、試料調製、再水和、電極液、通電履歴、温度、ゲルの保管状態を順番に見直す方法が実用的です。
| 観察される状態 | 考えられる要因 | 見直しの方向 |
|---|---|---|
| バンドが広い | 集束不足、塩の残存、試料過多 | 脱塩、ロード量、積算電圧を確認 |
| スポットが少ない | 可溶化不足、検出感度不足、試料量不足 | 抽出条件と染色法を再検討 |
| 背景が強い | 夾雑物、染色工程の不均一 | 試料精製と洗浄条件を確認 |
| 再現性が低い | 温度差、試薬差、操作時間のばらつき | 手順の標準化と対照試料の併用 |
再現性を高めるための管理
等電点電気泳動の再現性を高めるには、試料ごとの条件をそろえるだけでなく、工程全体を記録することが重要です。
抽出した試料の保存回数、凍結融解の履歴、タンパク質濃度、pH、導電率、使用した試薬のロットなどを管理すると、差の原因を追いやすくなります。
特に酸化を受けやすい試料では、保存中に電荷状態が変化する可能性があります。
目的に応じてプロテアーゼ阻害剤や還元剤を使用し、低温で速やかに処理する配慮が必要です。
対照試料を毎回同時に測定することは、装置やゲルの状態変化を把握するうえでも役立ちます。
結果を解釈する際には、位置のずれが生物学的な変化なのか、技術的な変動なのかを区別する視点を持ちましょう。
等電点電気泳動のまとめ
等電点電気泳動は、タンパク質やペプチドが持つ等電点の差を利用し、pH勾配の中で試料を集束させる分離法です。
分子は等電点より酸性側では正に、塩基性側では負に帯電し、自分の正味電荷がゼロになる位置へ移動します。
この仕組みにより、単に移動距離を比べる方法とは異なる、高い分解能の分離が可能になります。
pH勾配には担体両性電解質を用いる方式と、再現性に優れた固定化pH勾配方式があります。
目的タンパク質のpIが予測できる場合は、適切な狭域pH勾配を選ぶことで、より細かな差を捉えやすくなるでしょう。
試料の可溶化、脱塩、再水和、ロード量、通電条件、温度管理は、結果の質を左右する重要な工程です。
また、二次元電気泳動では第一方向として用いられ、分子量分離と組み合わせることで複雑なタンパク質混合物を解析できます。
等電点電気泳動は電荷の違いを読み解くための基本技術として、研究から品質評価まで幅広い場面で活用されています。